- 移动端
上海吉凯基因医学科技股份有限公司品牌商
15 年
手机商铺
- NaN
- 0
- 0
- 1
- 0



公司新闻/正文
因为诺奖,这些AAV要火了——诺奖级技术「光遗传学」实操全解析
23 人阅读发布时间:2026-10-10 13:28
2026年诺贝尔生理学或医学奖揭晓。Karl Deisseroth、Peter Hegemann及Georg Nagel获奖,以表彰他们"在光控离子通道和光遗传学方面的发现"。
2026年诺贝尔生理学或医学奖三位得主(Ill. Niklas Elmehed © Nobel Prize Outreach)
这项成果,被学界称为"宣告了神经科学新纪元的到来"。它让科学家能够通过一束光,精确地"打开"或"关闭"特定神经元的活性——从解析认知、记忆到研究神经退行性疾病机制,光遗传学都扮演着至关重要的角色。
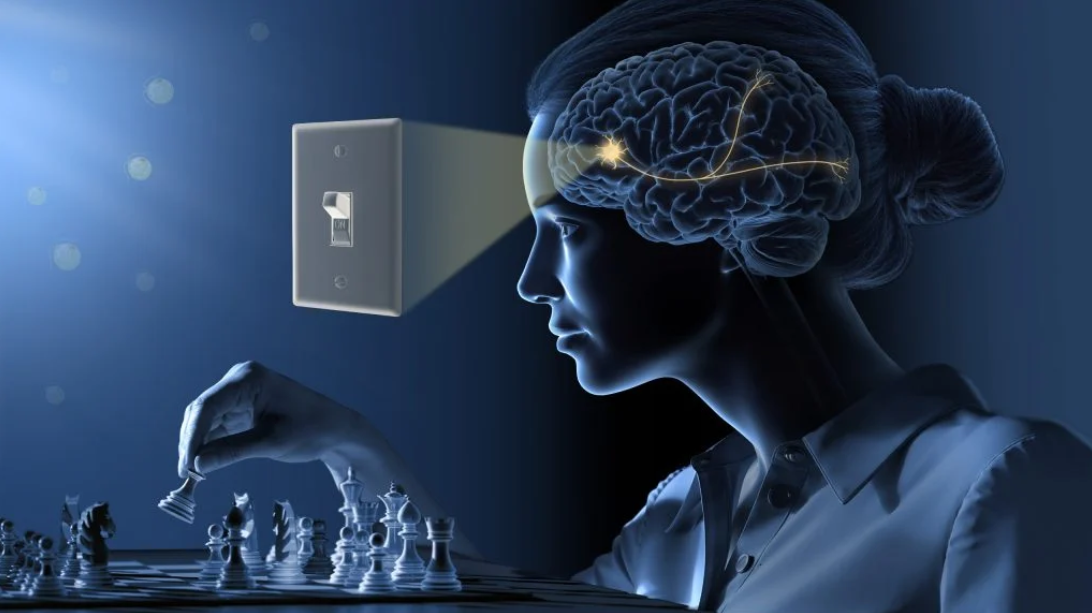
但对于真正要做实验的人来说,诺奖只是序章。光遗传学落地,绕不开三件事:选什么光敏蛋白、怎么把蛋白送进细胞、怎么把光照进组织。这三件事,恰恰是这项技术十五年来进化最快的三个方向——光敏蛋白反应更快、表达更精准、光的递送更便捷。下面逐一拆解。
光遗传学的原理
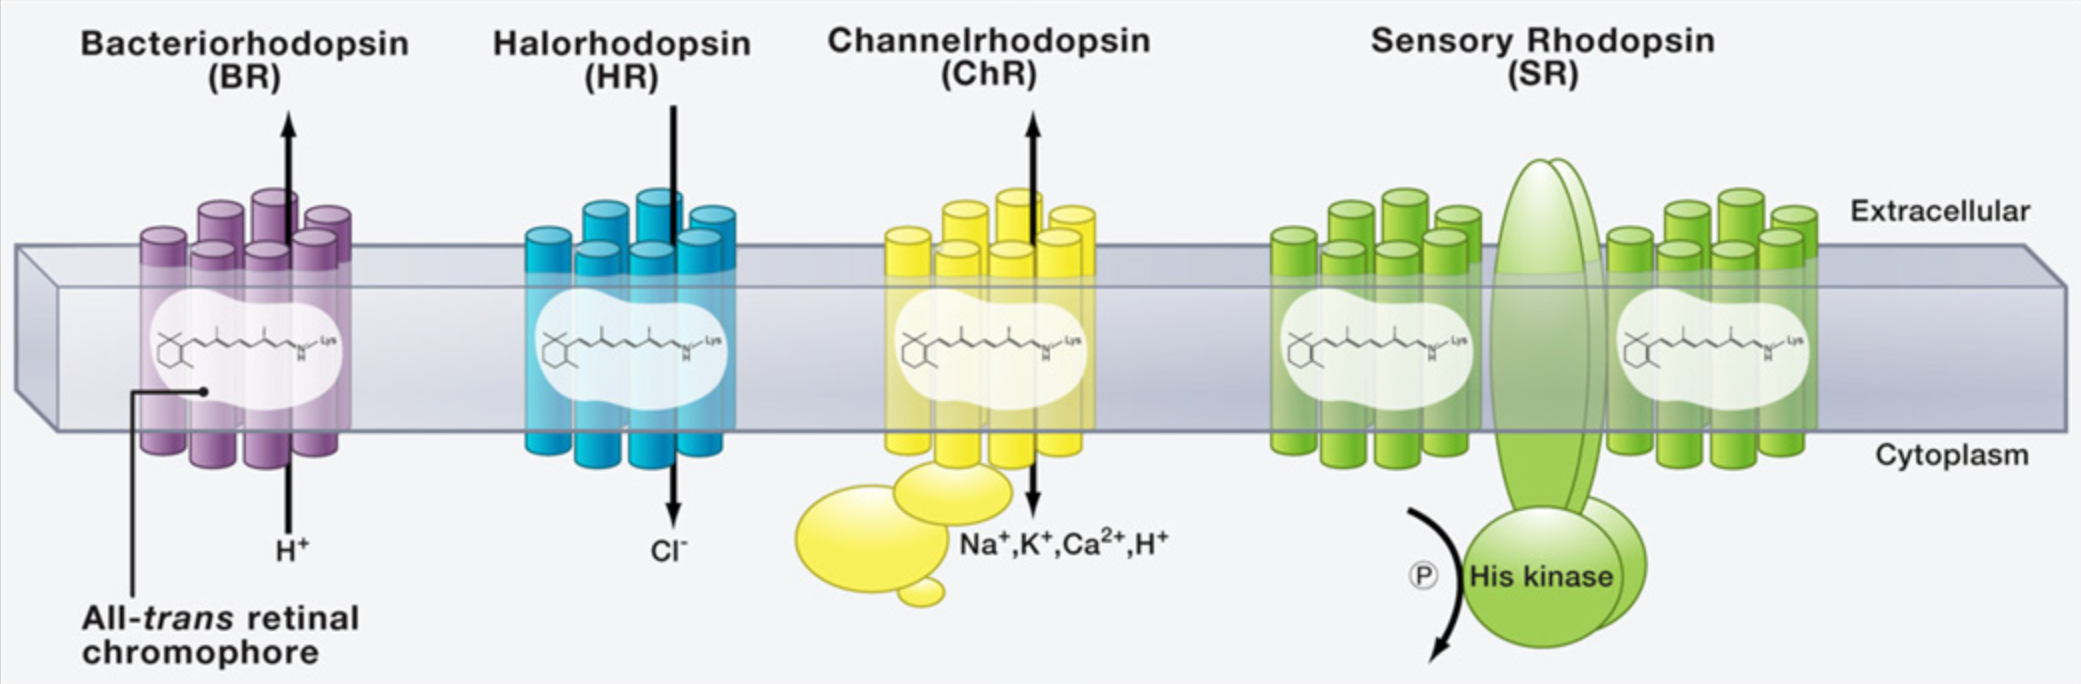
分两步实现"用光操控细胞":①借助遗传学手段(病毒载体或转基因)将光敏蛋白靶向表达于特定类型细胞;②用特定波长的光照射——光敏蛋白对Cl⁻、Na⁺、H⁺、K⁺等离子的通过具有选择性,光照后细胞膜两侧膜电位发生变化,从而选择性地兴奋或抑制细胞。时间精度最快可达亚毫秒级,空间精度可达单细胞水平——毫秒级时间精度+细胞类型特异性+非侵入可逆,让神经科学从被动"读取"大脑,跃升为主动"写入"大脑。
PMID: 22196724
一、光敏蛋白:更快、更深、更精细
光敏蛋白按功能分为兴奋性与抑制性两大阵营。
兴奋性光敏蛋白基本都由光敏感通道蛋白(Channelrhodopsins,ChRs)开发而来——ChRs是经典的非特异性阳离子通道,蓝光刺激后神经元去极化。抑制性光敏蛋白则以盐细菌视紫红质(Halorhodopsins,HR)、菌视紫红质(Bacteriorhodopsins,BR)为基础改造——HR是氯离子通道,黄光刺激后氯离子内流使细胞超极化;BR是质子泵,绿光刺激后质子外流使细胞超极化。
以往的应用一般选择ChR2(兴奋)+eNpHR3.0(抑制)这对"经典组合"。但随着改造型光敏蛋白不断问世,如今你有了更多、更锋利的选择:
-
照得更深:ReaChR、Jaws等能透过皮毛、头骨激活深层组织细胞,具有很大的临床应用潜力;
-
调得更准:soCoChR、Chronos、FLInChR等时间精度达1毫秒以内,细胞精度可实现对单个细胞的操控,有效避免干扰因素,实验准确度大大提高——研究神经环路对行为学的影响时尤其重要;
-
控得更久:ChR2-SFOs、VChR1-SFOs等双稳态光敏蛋白,可精确控制光遗传元件的作用时间;
-
表达更特异:stGtACR1/2由GtACR1/2改造而来,实现胞体膜表达特异性,解决了轴突、树突干扰的问题。
表1. 常用光敏蛋白列表
|
功能 |
Opsin |
机制 |
峰值激活波长 |
关闭动力学 |
参考文献 |
|
兴奋性 |
ChR2 |
阳离子通道 |
460 nm |
10 ms |
Boyden et al., 2005 |
|
兴奋性 |
ChR2 (H134R) |
阳离子通道 |
460 nm |
18 ms |
Nagel et al., 2005; Gradinaru et al., 2007 |
|
兴奋性 |
ChIEF |
阳离子通道 |
450 nm |
10 ms |
Lin et al., 2009 |
|
兴奋性 |
ChRGR |
阳离子通道 |
505 nm |
4~8 ms |
Wen et al., 2010 |
|
兴奋性 |
VChR1 |
阳离子通道 |
545 nm |
133 ms |
Zhang et al., 2008 |
|
兴奋性 |
C1V1 |
阳离子通道 |
540 nm |
156 ms |
Yizhar et al., 2011 |
|
兴奋性 |
C1V1 ChETA (E162T) |
阳离子通道 |
530 nm |
58 ms |
Yizhar et al., 2011 |
|
兴奋性 |
soCoChR |
阳离子通道 |
480 nm |
<1 ms |
Boyden et al., 2014 |
|
兴奋性 |
Chronos |
阳离子通道 |
480 nm |
<1 ms |
Daniel Keppeler et al., 2018 |
|
兴奋性 |
ReaChR |
阳离子通道 |
590~630 nm |
2.4 ms |
Lin JY et al., 2013 |
|
抑制性 |
eNpHR 3.0 |
氯离子通道 |
590 nm |
4.2 ms |
Gradinaru et al., 2010 |
|
抑制性 |
Arch/ArchT |
质子泵 |
566 nm |
9 ms |
Chow et al., 2010 |
|
抑制性 |
Mac |
质子泵 |
470 nm |
- |
Brian Y et al., 2010 |
|
抑制性 |
eBR |
质子泵 |
540 nm |
19 ms |
Gradinaru et al., 2010 |
|
抑制性 |
Jaws |
质子泵 |
635 nm |
18 ms |
Amy S Chuong et al., 2014 |
|
抑制性 |
stGtACR1/2 |
离子通道 |
593 nm |
- |
Mathias Mahn et al., 2018 |
|
抑制性 |
FLInChR |
阳离子通道 |
525 nm |
<1 ms |
Jennifer Brown et al., 2018 |
|
双向 |
ChR2-SFOs |
阳离子通道 |
470 nm / 590 nm |
2 s~29 min |
Berndt et al., 2009; Bamann et al., 2010; Yizhar et al., 2011 |
|
双向 |
VChR1-SFOs |
阳离子通道 |
560 nm / 390 nm |
32 s / 5 min |
- |
二、表达递送:让蛋白"住"进正确的细胞
与GFP的遗传编辑类似,在特定细胞中表达光敏蛋白可通过病毒注射或转基因动物实现。但转基因动物操作复杂、周期长、成本高——因此目前体内神经元表达光敏蛋白主要采用病毒载体注射,常用安全高效的腺相关病毒AAV,细胞特异性则一般通过特异性启动子实现。
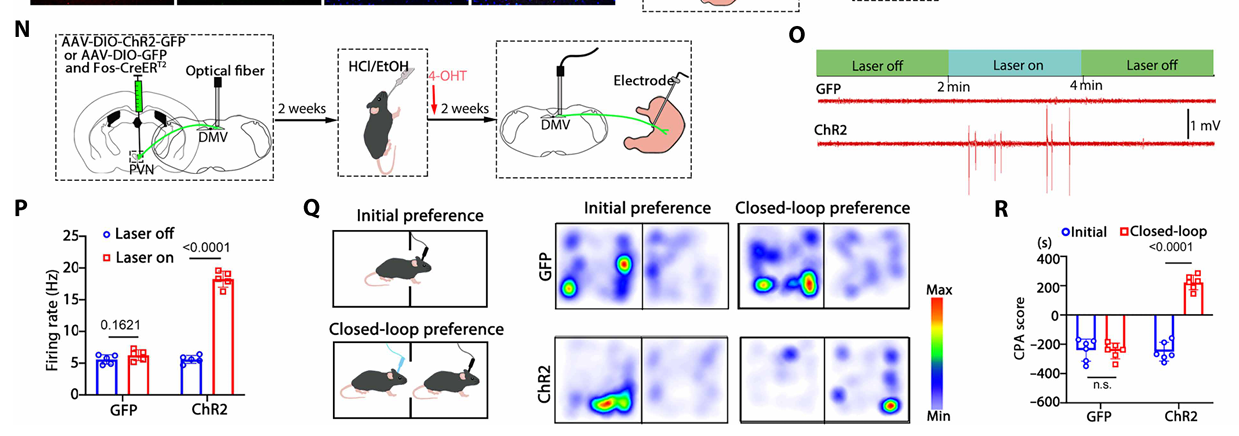
吉凯客户文献:PMID: 42139357
但这里有一个绕不开的坑:光敏蛋白必须在细胞内有足够的表达水平才能发挥调控作用,而有些细胞类型的特异性启动子转录活性偏偏很弱。怎么办?Cre-loxP系统来救场——构建带有loxP开关的AAV载体,注射到细胞特异性表达Cre的小鼠中。由于Cre重组酶活性高,目的基因序列发生反转,进而在强启动子作用下高水平表达。弱启动子的细胞,也能拿到强表达。
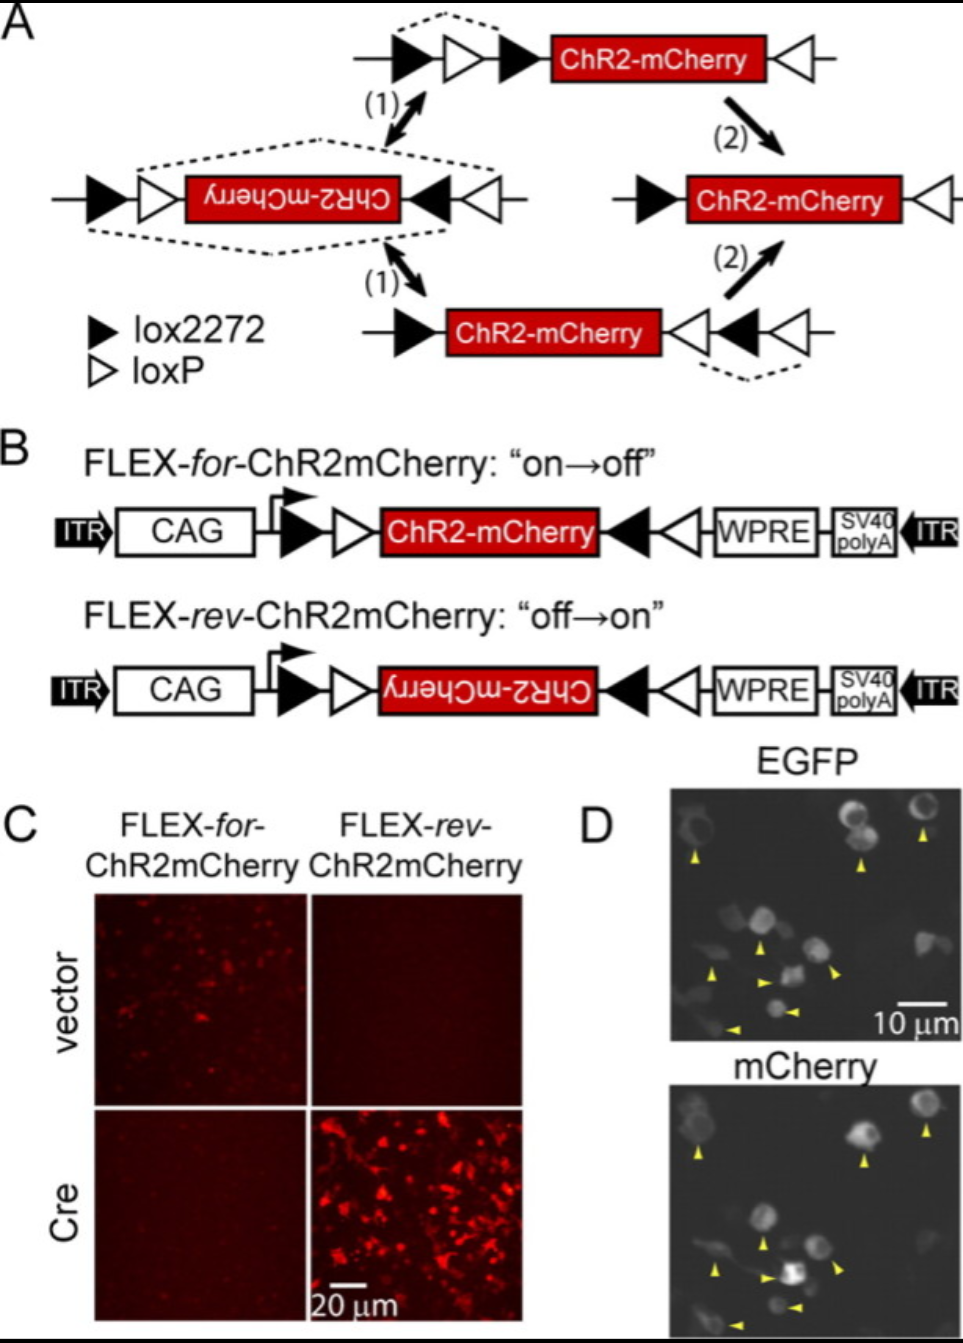
PMID: 18614669
三、光的递送:让光"照"到正确的位置
要控制细胞,就要保证光能照到表达光敏蛋白的细胞——光的递送至关重要。
-
体外实验:用激光或LED,经显微镜微光路直接照射靶细胞即可激活;
-
体内实验:常用轻量柔性光纤传递光信号,或用双光子给予特定脑区光刺激。但这些方式均需在动物头部连接光纤,一定程度上限制了动物自由活动,影响行为学研究;
-
破局方案:无线光极的发明很好地解决了这个问题,让动物真正"卸下管线、自由行动"。
在过去近15年中,随着更灵敏、定点更准确的新型光敏蛋白不断发现,以及各种微损、灵活的光递送技术不断发展,光遗传技术作为科研之路的希望之光,不仅照亮了神经科学研究,也作为极具潜力的手段应用于嗜睡、抑郁症、失明、肌无力、癫痫等多种疾病的临床治疗研究中。
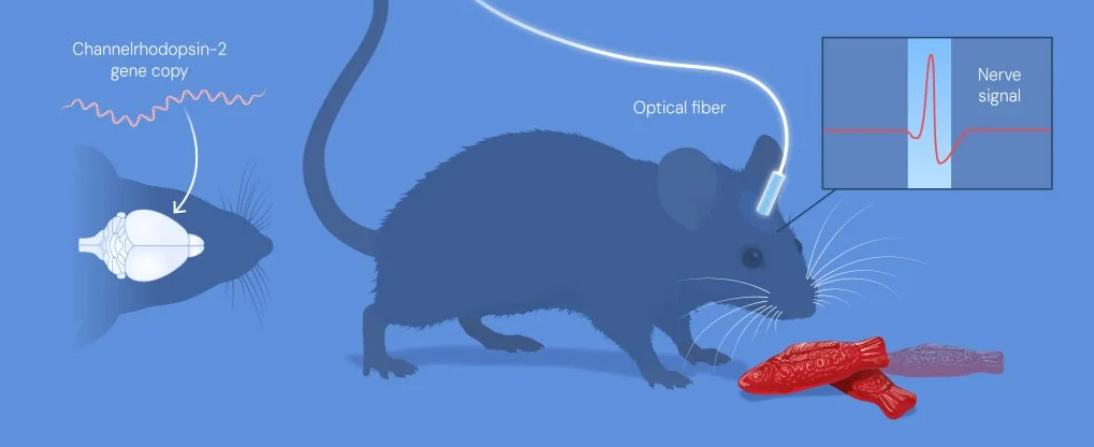
Deisseroth的研究团队将通道视紫红质-2基因传递到活体小鼠的大脑中。
吉凯相关产品
工欲善其事,必先利其器。吉凯基因具有多种光遗传元件AAV现货,覆盖主流兴奋性(ChR2、C1V1、ChETA等)、抑制性(ArchT、eNpHR3.0、Mac、Jaws等)及Cre依赖(FLEX/DIO)表达框架,启动子涵盖CAG、CaMKIIa、hSyn、EF1a、GFAP等——从工具选择、载体构建到病毒包装提供一站式服务。此外还提供特殊光遗传AAV定制服务,满足各种实验需求。
光遗传元件AAV现货列表:
|
兴奋性元件 |
抑制性元件 |
Cre依赖/其他元件 |
|
rAAV-CAG-ChR2-GFP |
rAAV-FLEX-ArchT-tdTomato |
rAAV-EF1a-DIO-hChR2(H134R)-mCherry-WPRE-HGHpA |
|
rAAV-CaMKIIa-hChR2(E123T/T159C)-mCherry |
rAAV-FLEX-ArchT-GFP |
rAAV-Ef1a-DIO-C1V1 (t/t)-TS-EYFP |
|
rAAV-CaMKIIa-hChR2(E123T/T159C)-EYFP |
rAAV-CAG-ArchT-GFP |
rAAV-Ef1a-DIO-C1V1 (t/t)-TS-mCherry |
|
rAAV-CaMKIIa-hChR2(H134R)-mCherry |
rAAV-CaMKII-Jaws-KGC-GFP-ER2 |
rAAV-Ef1a-DIO-ChETA-EYFP |
|
rAAV-CaMKIIa-hChR2(H134R)-EYFP |
rAAV-CaMKIIa-eArchT3.0-P2A-EGFP |
rAAV-Ef1a-DIO-eNpHR 3.0-EYFP |
|
rAAV-GFAP-hChR2(H134R)-EYFP |
rAAV-CaMKIIa-eArch 3.0-EYFP |
rAAV-EF1a-DIO-hChR2(E123A)-eYFP |
|
rAAV-GFAP-hChR2(H134R)-mCherry |
rAAV-hSyn-eArchT3.0-P2A-EGFP |
rAAV-Syn-FLEX-rc[ChrimsonR-tdTomato] |
|
rAAV-hSyn-hChR2(H134R)-mCherry |
rAAV-CAMKII-eNpHR3.0-mCherry |
|
|
rAAV-hSyn-ChR2-mcherry |
|
|
|
rAAV-CaMKIIa-ChR2-mCherry |
|
|
|
rAAV-CaMKIIa-C1V1 (t/t)-TS-EYFP |
|
|
|
rAAV-CaMKIIa-C1V1 (t/t)-TS-mCherry |
|
|
|
rAAV-Syn-ChrimsonR-GFP |
|
|
感兴趣的老师可以通过研转通小程序进行载体速览。