- 移动端

上海吉凯基因医学科技股份有限公司品牌商
15 年
手机商铺
- NaN
- 0
- 0
- 1
- 0



公司新闻/正文
一文读懂精准基因编辑:CBE、ABE与PE怎么选?
20 人阅读发布时间:2026-11-13 10:22
目前已发现的人类相关遗传病中,有相当一部分与基因组点突变相关。建立适合研究目标的定点改造体系,有助于开展疾病机制解析、基因功能验证、同位点对照和治疗策略研究。
CBE、ABE与PE是常用的精准基因编辑工具。与传统依赖DNA双链断裂的编辑路线相比,碱基编辑器可在特定位点实现碱基转换;先导编辑器则通过pegRNA提供编辑模板,可覆盖更多序列改造类型。实际实验应先明确目标碱基变化、PAM条件、编辑窗口和细胞背景,再通过测序等手段评估编辑效率、产物纯度、旁观者编辑、插入缺失及脱靶风险。
胞嘧啶碱基编辑器:CBE
CBE(Cytosine Base Editor,胞嘧啶碱基编辑器)属于CRISPR衍生的定点编辑工具,可在适宜的目标窗口内实现C·G到T·A的碱基转换。它通常不需要外源DNA模板,也不以DNA双链断裂作为主要编辑方式。
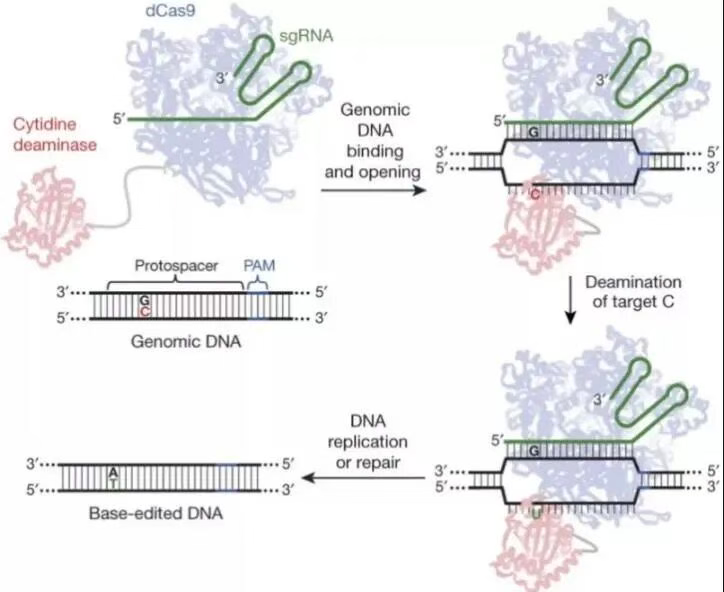
经典CBE常由sgRNA、nCas9(D10A切口酶)、胞嘧啶脱氨酶rAPOBEC1和UGI组成。sgRNA引导融合蛋白识别目标序列,Cas9结合形成R-loop并暴露局部单链DNA;脱氨酶将编辑窗口内的胞嘧啶C转为尿嘧啶U,形成U:G错配。UGI可减少细胞UNG对U的切除,使编辑中间体更有机会进入后续修复或复制。
- 定位与单链暴露:经典BE3常见编辑窗口约为原间隔序列第4至8位,具体范围会受版本和靶位点影响。
- 碱基脱氨与中间体保护:rAPOBEC1将C转为U,UGI降低碱基切除修复对U的影响。
- 编辑结果固定:nCas9在互补链制造单链切口,使修复过程偏向保留编辑结果;复制或修复后可形成T:A碱基对。
不同细胞和位点的编辑产物可能存在差异,因此需要结合靶向测序验证目标转换、旁观者编辑和插入缺失情况。
腺嘌呤碱基编辑器:ABE
ABE(Adenine Base Editor,腺嘌呤碱基编辑器)可在适宜窗口内实现A·T到G·C的碱基转换。其通常由sgRNA、nCas9(D10A切口酶)和经工程化改造的TadA腺嘌呤脱氨酶组成。
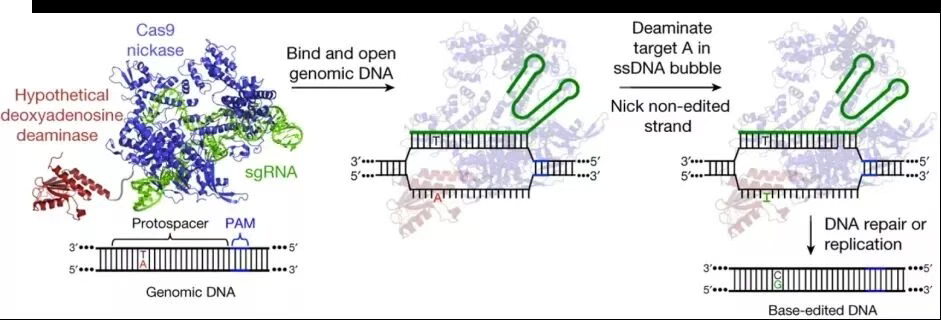
sgRNA引导ABE复合物到达目标位点后,Cas9结合DNA并暴露局部单链。工程化TadA可将窗口内DNA中的脱氧腺苷转为脱氧肌苷,形成I:T错配;DNA聚合酶通常将含I的模板按类似G的方式读取并与C配对,随后通过修复过程固定为A·T到G·C的改变。经典ABE7.10的常见活性窗口约为原间隔序列第4至7位,但不同ABE版本不应按同一窗口处理。
- 适用变化:适用于可由A到G或互补链T到C实现的目标碱基改造。
- 设计重点:需要同时评估PAM、靶碱基在编辑窗口中的位置、旁观者碱基和目标细胞的递送条件。
- 验证重点:除目标编辑比例外,也应检测非预期编辑产物和细胞背景相关差异。
先导编辑器:PE
PE(Prime Editor,先导编辑器或引导编辑器)将nCas9(H840A)与工程化M-MLV逆转录酶融合,并使用同时具备定位与编辑模板功能的pegRNA。与CBE和ABE相比,PE可用于更多类型的碱基替换,以及小片段插入和缺失。
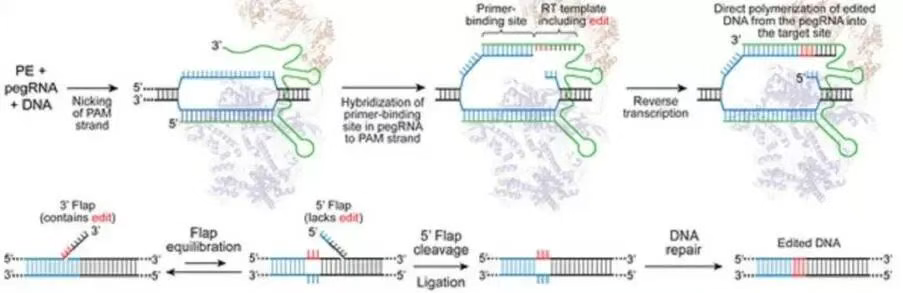
在编辑过程中,pegRNA引导融合蛋白结合目标位点,nCas9在一条DNA链上制造切口并暴露可延伸的3′端。pegRNA的引物结合区与该DNA端配对,其逆转录模板区编码拟引入的序列变化;逆转录酶以模板区为蓝本延伸DNA,生成包含目标编辑的新DNA片段。新生成的3′ flap与原有序列经链处理、连接和修复后,编辑可被固定到目标位点。
PE3可额外使用一条sgRNA在未编辑链上制造单链切口,提高部分位点的编辑效率;同时也可能增加插入缺失等副产物。因此,PE设计通常需要综合考虑pegRNA的PBS和RTT参数、编辑类型、递送方式及目标细胞的修复偏好。
三类工具怎么选:从目标编辑类型出发
工具选择的起点是目标序列变化,而不是单纯比较某一种工具。对于能够通过C·G到T·A实现的点突变,可评估CBE;对于可由A·T到G·C实现的点突变,可评估ABE;当需要更多碱基替换类型、短片段插入或缺失时,可将PE纳入方案比较。
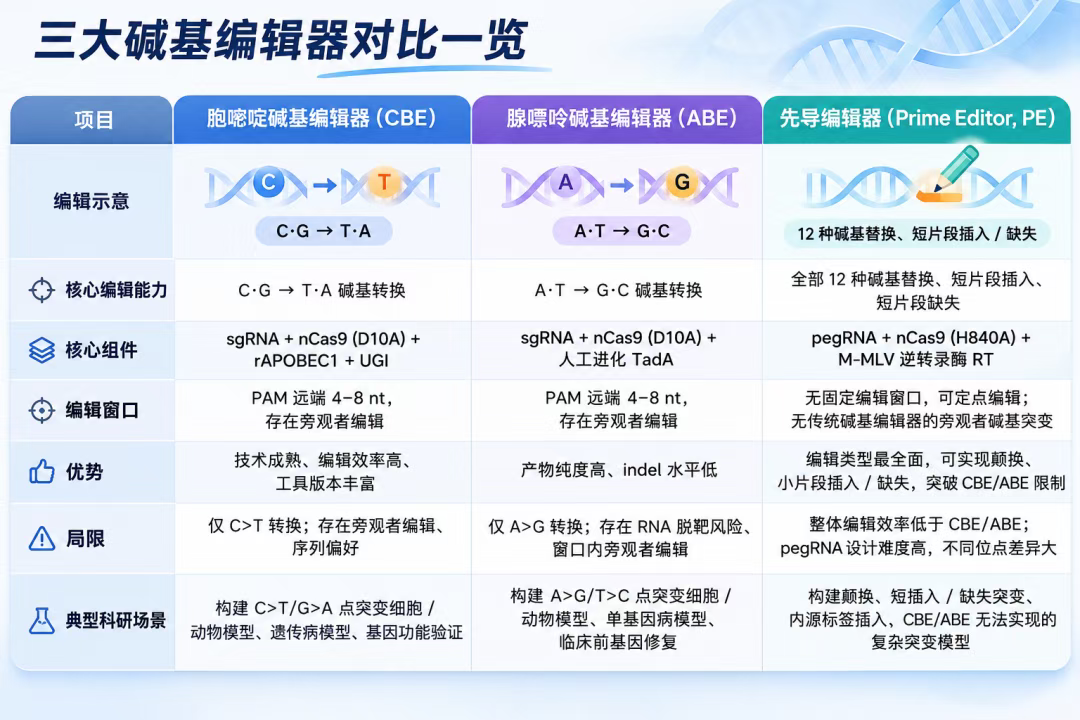
- 先核对编辑目标:明确希望得到的碱基变化、插入或缺失类型,并确认目标位点及上下游序列。
- 再核对设计约束:结合PAM、编辑窗口、旁观者碱基,或pegRNA设计条件筛选可行方案。
- 最后做实证比较:在目标细胞中评估编辑效率、产物纯度、旁观者编辑、插入缺失、脱靶及相关功能表型。
吉凯基因:碱基编辑相关研究支持
围绕点突变、基因定点改造和同位点对照研究,吉凯基因可结合研究需求提供CBE、ABE相关编辑方案与pegRNA设计支持,协助开展目标位点编辑研究。对于点突变细胞系、细胞库资源和动物模型等课题,也可结合实验目标配置相应的研究服务。
- 编辑方案设计:根据目标碱基变化、PAM与编辑窗口,评估CBE、ABE或PE的适配性。
- 细胞与动物模型:支持点突变细胞系构建、稳定细胞模型及相关动物模型研究。
- 验证路径设计:可结合靶向测序、功能表型和机制检测,建立从位点编辑到功能验证的研究流程。
不同靶位点、细胞类型和研究终点对工具选择和验证深度的要求不同,可结合具体项目进一步确定实验方案。